
Sầu riêng (Durio zibethinus L.), biểu tượng và “Vua của các loại trái cây” tại khu vực Đông Nam Á, là một trong những cây trồng có giá trị kinh tế khổng lồ. Tuy nhiên, việc canh tác sầu riêng gặp nhiều thách thức lớn do bộ rễ tương đối nhạy cảm, dễ bị tổn thương bởi các tác nhân sinh học (như nấm gây bệnh Phytophthora palmivora) và các yếu tố phi sinh học (hạn hán, nhiễm mặn, suy thoái cấu trúc đất). Trong bối cảnh nền nông nghiệp hiện đại đang phải đối mặt với các vấn đề về môi trường và chi phí vật tư leo thang, việc tìm hiểu và ứng dụng các cơ chế sinh học tự nhiên trở thành xu hướng tất yếu. Một trong những liên minh sinh học có ý nghĩa đặc biệt quan trọng, định hình sự sống trên bề mặt địa cầu và vô cùng thiết yếu cho cây sầu riêng, chính là mối quan hệ cộng sinh nấm rễ (Mycorrhizae), cụ thể là Nấm rễ nội sinh (Arbuscular Mycorrhizal Fungi – AMF).
Trong bài báo cáo chuyên sâu này, chúng ta sẽ phân tích một cách chi tiết, từ cấp độ sinh học phân tử đến các tương tác sinh thái hệ vùng rễ, về cơ chế hoạt động, sự trao đổi chất đa chiều, và giá trị thực tiễn vô giá của mối quan hệ đặc hiệu giữa nấm rễ AMF và cây sầu riêng.
1. Nền Tảng Sinh Học Sự Tiến Hóa Của Nấm Rễ Cộng Sinh (Mycorrhizae)
Thuật ngữ “Mycorrhiza” (được nhà thực vật học người Đức Albert Bernhard Frank đề xuất vào năm 1885) bắt nguồn từ tiếng Hy Lạp, trong đó “mykes” nghĩa là nấm và “rhiza” nghĩa là rễ. Đây là đại diện cho mối quan hệ cộng sinh tương hỗ (mutualistic symbiosis) giữa các nấm đất chuyên biệt và rễ của hơn 80% các loài thực vật trên cạn. Các bằng chứng hóa thạch chỉ ra rằng liên minh này đã tồn tại ít nhất 400 triệu năm, có khả năng là yếu tố tiên quyết giúp các loài thực vật nguyên thủy có thể định cư từ môi trường nước lên môi trường trên cạn, nơi các chất dinh dưỡng khan hiếm và phân tán hơn.
Hệ thực vật có các loại nấm cộng sinh khác nhau. Tuy nhiên, ở các cây thân gỗ nhiệt đới, đặc biệt là cây ăn quả như sầu riêng, Nấm rễ nội sinh (Endomycorrhizae), mà phổ biến và quan trọng nhất là Arbuscular Mycorrhizal Fungi (AMF) thuộc ngành Glomeromycota, đóng vai trò sống còn nhất.
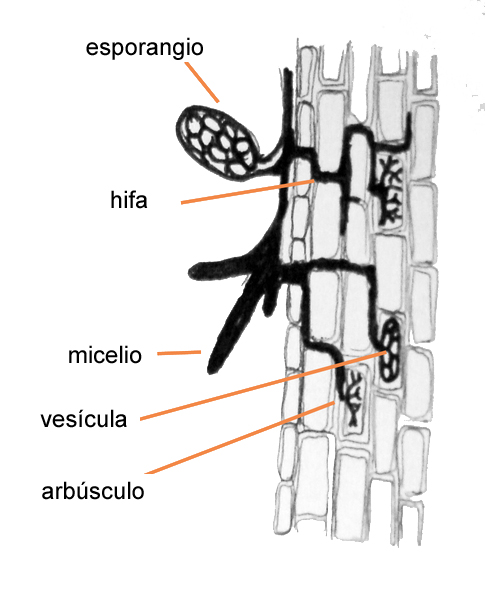
1.1. Đặc Điểm Phân Loại Và Cấu Trúc Của AMF Trên Sầu Riêng
AMF là nấm dị dưỡng bắt buộc (obligate biotrophs), nghĩa là chúng hoàn toàn phụ thuộc vào một vật chủ sống để hoàn thành vòng đời và lấy chất hữu cơ (carbon). Các chi nấm AMF phổ biến thường được tìm thấy cộng sinh với sầu riêng bao gồm Glomus, Gigaspora, Acaulospora và Scutellospora. Khác với nấm rễ ngoại sinh (Ectomycorrhizae – thường bao bọc bên ngoài rễ), AMF có một phương thức xâm nhập sâu hơn vào bên trong tế bào rễ, tạo ra một giao diện giao tiếp gần gũi nhất có thể trong thế giới sinh học.
AMF hình thành ba cấu trúc chính tạo nên hệ thống cộng sinh hoàn chỉnh:
- Túi cành (Arbuscules): Là cấu trúc đặc trưng nhất của AMF. Sau khi xâm nhập vào vỏ rễ (cortical cells), sợi nấm phân nhánh dày đặc như hình một cái cây thu nhỏ, tạo nên các túi cành. Mặc dù nằm trong tế bào, màng sinh chất của tế bào rễ sẽ invaginate (lõm vào) bao bọc lấy arbuscule, tạo thành một bề mặt giao diện cực kỳ lớn để trao đổi chất (periarbuscular membrane).
- Bào tử châm (Vesicles): Là các túi phình to hình bầu dục được hình thành ở đầu hoặc giữa các sợi nấm trong tế bào vỏ rễ. Chúng chứa nhiều lipid và phục vụ chức năng như một kho dự trữ năng lượng sinh tồn của nấm trong các điều kiện bất lợi.
- Hệ sợi nấm ngoài rễ (Extraradical Mycelium – ERM): Mạng lưới các sợi nấm cực mịn vươn dài ra ngoài môi trường đất. Đây chính là hệ thống “khai khoáng” chuyên nghiệp, có thể xuyên qua các lỗ hổng vi mô của đất mà lông hút không thể chạm tới.
2. Cơ Chế Nhận Diện Và Thiết Lập Giao Diện Cộng Sinh Mức Độ Phân Tử
Việc AMF xâm nhập vào rễ sầu riêng không phải là một sự kiện ngẫu nhiên hay một sự tấn công ký sinh, mà là một quá trình đàm phán phân tử phức tạp được kiểm soát chặt chẽ bởi cả hai bên.
2.1. Tín Hiệu Hóa Học Tiền Cộng Sinh (Pre-symbiotic Signaling)
Quá trình này bắt đầu khi cây sầu riêng đối mặt với tình trạng giới hạn dinh dưỡng, đặc biệt là sự thiếu hụt Photpho (P) hoặc Nitơ (N). Đáp lại, rễ cây sẽ giải phóng vào dịch vùng rễ (rhizosphere) một nhóm phytohormone có tên là strigolactones. Khi các bào tử nấm AMF đang ngủ đông trong đất cảm nhận được strigolactones với nồng độ thấp (ở mức picomolar), quá trình nảy mầm của bào tử được kích hoạt dữ dội, và ống mầm (germ tube) sẽ định hướng sinh trưởng về phía nồng độ strigolactones cao hơn (tức là rễ cây sầu riêng).
Đồng thời, sợi nấm AMF phản hồi bằng cách tiết ra một hỗn hợp các tín hiệu hóa học được gọi là Myc factors (chủ yếu là các lipochitooligosaccharides – LCOs và chitin oligosaccharides – COs). Các thụ thể trên màng biểu bì của rễ sầu riêng nhận diện các Myc factors này. Sự nhận diện thành công sẽ khởi động một con đường truyền tín hiệu đặc hiệu gọi là Common Symbiosis Pathway (CSP).
2.2. Sự Xâm Nhập Và Tổ Chức Cấu Trúc Bức Tường Tế Bào
Việc kích hoạt CSP dẫn đến sự giải phóng ion canxi (Ca2+) dao động nhịp nhàng trong nhân tế bào biểu bì rễ sầu riêng. Sự dao động canxi này kích hoạt các gene quy định sự cộng sinh (symbiosis-related genes), hướng dẫn tế bào rễ tự tái cấu trúc. Khi sợi nấm tiếp xúc với bề mặt rễ, nó hình thành một cấu trúc gọi là giác bám (hyphopodium).
Thay vì sử dụng enzyme để phá vỡ bạo lực vách tế bào như các nấm bệnh học (ví dụ Phytophthora), rễ cây sầu riêng chủ động hướng dẫn sự đi vào của AMF bằng cách xây dựng một cấu trúc hình ống nội bào được gọi là Pre-Penetration Apparatus (PPA). Sợi nấm phát triển an toàn xuyên qua PPA đi sâu vào các lớp tế bào vỏ rễ (cortical layer), đảm bảo tính toàn vẹn của tế bào, phản ánh sự hợp tác tuyệt đối chứ không phải sự phá hoại.
3. Trung Tâm Dinh Dưỡng: Quá Trình Trao Đổi Chất Phức Tạp Tại Túi Cành (Arbuscules)
Trái tim của mối quan hệ AMF-Sầu riêng nằm ở các túi cành. Đây là thị trường trao đổi hàng hóa vi mô, nơi carbon hữu cơ quang hợp từ cây sầu riêng được đánh đổi lấy các khoáng chất mà nấm khai thác được từ đất.
3.1. Dòng Chảy Carbon Từ Sầu Riêng Cho Nấm
Sầu riêng sử dụng quá trình quang hợp ở bộ lá rậm rạp để cố định CO2 thành các phân tử đường (sucrose). Khoảng 10% đến 20% lượng carbon cố định này có thể được chuyển xuống rễ và sau đó cung cấp cho đối tác nấm AMF. Sucrose khi đến rễ sẽ được enzyme biến đổi thành các đường đơn giản (hexose). Nấm AMF không có gene mã hóa cho các enzyme thủy phân đường thực vật quan trọng, vì vậy chúng phụ thuộc hoàn toàn vào nguồn hexose do cây chủ bơm qua màng periarbuscular membrane. Gần đây, các nghiên cứu còn phát hiện ra rằng thực vật cung cấp các phân tử lipid (như palmitic acid) cho nấm, điều kiện sống còn để nấm có thể hình thành bào tử và phát triển hệ sợi ngoài.
3.2. Động Lực Hấp Thu Và Vận Chuyển Photpho (P)
Photpho là một nguyên tố đa lượng mà cây sầu riêng rất cần cho sự phát triển của hệ rễ, hình thành mầm hoa, và đóng vai trò chính trong việc cấu tạo màng tế bào, ATP, và acid nucleic. Tuy nhiên, P trong đất chủ yếu ở dạng không hòa tan và bất động (ví dụ liên kết với Ca2+ ở đất kiềm hoặc Al3+, Fe3+ ở đất phèn chua), dẫn đến việc vùng đất xung quanh rễ nhanh chóng bị cạn kiệt P (depletion zone).
Mạng lưới hệ sợi nấm ngoài rễ (ERM) của AMF vượt ra xa vùng cạn kiệt P (lên đến hàng chục cm). Chúng tiết ra các enzyme phosphatase, phytase và các axit hữu cơ trọng lượng phân tử thấp (citric, malic, oxalic) làm thay đổi pH và chelating các ion kim loại, giải phóng orthophosphate. Nấm AMF sử dụng các chất vận chuyển phosphate (Pi transporters) có ái lực cao trên màng tế bào của ERM để hút P vào. P được chuyển hóa thành dạng polyphosphate để lưu trữ và vận chuyển dọc theo hệ sợi nấm, đi ngược về phía rễ sầu riêng nhờ các dòng tế bào chất (cytoplasmic streaming). Khi đến arbuscules, polyphosphate được phân cắt lại thành orthophosphate và xuất ra giao diện rễ nhờ các protein vận chuyển chuyên biệt được kích hoạt trong môi trường cộng sinh (Mycorrhiza-inducible Pi transporters – PTs).
3.3. Tối Ưu Hóa Dinh Dưỡng: Nitơ, Kali và Các Vi Nguyên Tố
Ngoài P, AMF đóng vai trò lớn trong việc hấp thu các chất sau:
- Nitơ (N): Mặc dù hệ vi sinh vật cố định đạm (rhizobium) nổi tiếng trong cây họ đậu, AMF lại chuyên về việc tiếp cận các nguồn đạm hữu cơ. Sợi nấm có khả năng phân giải các hợp chất hữu cơ chứa đạm phức tạp, chuyển chúng thành dạng amoni (NH4+) hoặc nitrat (NO3-), và thậm chí vận chuyển dưới dạng acid amin (như arginine) đến cây chủ. Việc này giúp vườn sầu riêng tận dụng tối đa lượng phân hữu cơ.
- Kali (K) và Canxi (Ca): Hai yếu tố quan trọng quyết định chất lượng trái sầu riêng. Kali cần thiết cho quá trình vận chuyển đường vào trái (tăng độ Brix), trong khi Canxi giúp vững chắc thành tế bào, chống sượng cơm và nứt cuống. Mạng lưới AMF giúp hấp thu K và Ca vô cùng hiệu quả.
- Vi lượng (Zn, Cu, Fe): Thiết hụt kẽm (cháy lá viền non, lá nhỏ, biến dạng lá) là hội chứng cực kỳ phổ biến ở sầu riêng. Sợi nấm AMF có tiết diện nhỏ, dễ dàng len lỏi vào vi lỗ chân lông trong đất để hấp thụ Zn và Cu hòa tan, chuyển trực tiếp vào rễ cây.
4. Lợi Ích Vượt Trội Về Mặt Sinh Thái Trọng Điểm Đối Với Vườn Sầu Riêng
Sự tham gia của AMF không chỉ giới hạn ở một hệ thống “máy bơm phân bón tự nhiên”. Mối cộng sinh này mang lại sự đa nhiệm về bảo vệ môi trường, tối ưu cấu trúc vật lý của đất, và kích hoạt các hệ thống miễn dịch.
4.1. Kiến Tạo Cấu Trúc Đất Và Glomalin
Hệ thống sợi nấm ngoài rễ AMF không ngừng sinh trưởng, chết đi và phân hủy. Trong quá trình đó, tế bào nấm tiết ra một hợp chất glycoprotein ngoại bào, đặc hiệu vô cùng quan trọng có tên là Glomalin (được khám phá bởi USDA vào năm 1996). Glomalin hoạt động như một loại keo sinh học cực bền (bền với nhiệt độ và không tan trong nước), nó gắn kết các hạt bùn, sét và cát lại thành các đoàn lạp đất (macro-aggregates) lớn và ổn định.
Nhờ glomalin, đất tại các vườn sầu riêng sẽ có độ tơi xốp tối ưu, khả năng thấm và giữ nước (water holding capacity) tăng lên đáng kể, ngăn ngừa tình trạng nén dẽ (compaction), giúp rễ sầu riêng dễ dàng đâm sâu và trao đổi không khí, đồng thời giảm thiểu hiện tượng xói mòn và rửa trôi phân bón do mưa lớn nhiệt đới.
4.2. Khả Năng Kháng Hạn (Drought Tolerance) Đặc Thù
Biến đổi khí hậu mang đến những chu kỳ El Niño gây hạn mặn khắc nghiệt, đe dọa lớn đến năng suất sầu riêng. Cây sầu riêng cộng sinh AMF thể hiện khả năng chịu hạn xuất sắc thông qua các yếu tố:
- Sợi nấm xuyên thủng các mao mạch đất siêu nhỏ, hút những giọt nước cuối cùng nơi mà áp suất thẩm thấu của lông hút rễ sầu riêng đành bất lực.
- Thúc đẩy sự điều hòa độ mở của khí khổng (stomata) trên lá, thông qua việc điều hòa phytohormone abscisic acid (ABA), từ đó giảm sự mất nước do thoát hơi nước qua lá một cách hiệu quả mà không làm ngừng hẳn quá trình quang hợp.
- Bảo vệ màng tế bào rễ khỏi sự peroxy hóa lipid dưới áp lực oxy hóa do khô hạn gây ra, thông qua việc sản sinh enzyme chống oxy hóa (như SOD, CAT).
4.3. Cơ Chế Kháng Bệnh Sinh Học (Biocontrol) Và Mycorrhiza-Induced Resistance (MIR)
Sự hiện diện của AMF trong rễ sầu riêng tạo ra một hàng rào vững chắc chống lại các mầm bệnh nguy hiểm có nguồn gốc từ đất, điển hình nhất là bệnh thối rễ, xì mủ thân do Phytophthora palmivora, nấm Pythium spp., Fusarium spp. và tuyến trùng (Nematodes). Cơ chế tự vệ đa dạng bao gồm:
- Cạnh Tranh Trực Tiếp: AMF phát triển mạnh mẽ bên trong rễ và bao phủ môi trường rhizosphere, cạnh tranh trực tiếp không gian sống và các nguồn carbohydrate do rễ tiết ra, khiến mầm bệnh không còn cơ hội xâm nhập hoặc chết đói.
- Kích Hoạt Miễn Dịch Hệ Thống (MIR – Mycorrhiza-Induced Resistance): Đây là cơ chế tiên tiến nhất. Việc AMF xâm nhập thành công vào rễ đóng vai trò như một “mũi vaccine” mồi. Nó mồi (priming) cho hệ thống miễn dịch của cây sầu riêng thông qua con đường tín hiệu của Jasmonic acid (JA) và Salicylic acid (SA). Khi mầm bệnh thật sự tấn công, cây sầu riêng đã chuẩn bị sẵn sàng và phản ứng bùng chuyên biệt được giải phóng, tiết ra các hợp chất kháng khuẩn phytoalexins, tăng cường hóa gỗ (lignification) thành tế bào và tổng hợp các enzyme phân giải vỏ mầm bệnh (chitinase, β-1,3-glucanase) mạnh mẽ hơn rất nhiều.
5. Ứng Dụng Thực Tiễn Công Nghệ Mycorrhizae Trong Canh Tác Sầu Riêng Bền Vững
Để tận dụng tối đa hệ vi sinh nấm rễ này, bà con nông dân và các nhà vườn chuyên nghiệp cần thay đổi nhận thức từ việc khai thác bóc lột đất đai sang việc nuôi dưỡng hệ sinh thái đất.
5.1. Nhận Diện Sự Suy Thoái AMF Do Canh Tác Hóa Học
Sự suy giảm nghiêm trọng của tập đoàn AMF tự nhiên thường xảy ra tại các vườn sầu riêng áp dụng cường độ canh tác cao: cày xới đất sâu và quá mức làm đứt gãy mạng lưới nấm; sử dụng thuốc diệt nấm (Fungicides) liên tục dưới gốc làm giết chết sợi nấm AMF; và việc lạm dụng phân lân (P) vô cơ nồng độ cao (như DAP, Super lân). Khi nồng độ P dễ tiêu trong đất dư thừa, cây sầu riêng sẽ đánh giá rằng chúng “đã no” và lập tức ngừng tiết strigolactones, chặn lối vào của AMF, khiến chúng mất đi hệ thống bảo vệ miễn dịch mạnh mẽ.
5.2. Các Bước Kích Thích Và Nuôi Dưỡng Mycorrhizae
- Bổ Sung Hữu Cơ Thay Vì Hóa Học: Ưu tiên dùng phân hữu cơ hoai mục, phân chuồng, compost. Hữu cơ là thức ăn nền, cung cấp carbon dồi dào, thúc đẩy quá trình cộng sinh. Hữu cơ phân hủy chậm cung cấp các khoáng đa lượng từ từ, không gây sốc cho cây và không làm ức chế AMF.
- Quản Lý Việc Bón Lân (Phosphorus Management): Nên chuyển sang các dạng lân chậm tan hoặc chia nhỏ liều lượng lân. Hạn chế tối đa việc đổ một lượng lớn lân vô cơ hòa tan nhanh vào đất. Việc duy trì một mức độ lân vừa đủ, hơi thiếu, là động lực để sầu riêng “kêu gọi” nấm AMF phát triển.
- Thay Đổi Phương Pháp Quản Lý Cỏ Dại: Bỏ thói quen sử dụng thuốc diệt cỏ. Duy trì một lớp thảm thực vật che phủ (như cây họ Đậu, cỏ lạc, cỏ dại bản địa). Rễ của các loài cây cỏ này đóng vai trò như “trạm trung chuyển”, giúp nấm AMF duy trì sự sống ngay cả khi sầu riêng non chưa phát triển rễ tới, hình thành một Mạng Lưới Sợi Nấm Chung (Common Mycorrhizal Network – CMN) mạnh mẽ cho toàn vườn.
5.3. Sử Dụng Các Chế Phẩm Vi Sinh Vật AMF Thương Mại
Việc sử dụng trực tiếp các chế phẩm chứa bào tử nấm AMF (Inoculants) đang trở thành một phương pháp canh tác chủ đạo trên thế giới.
- Bầu Ươm (Nursery): Đây là giai đoạn lý tưởng nhất. Trộn hỗn hợp nấm rễ AMF vào giá thể ươm cây giống. Khi hạt sầu riêng nảy mầm hoặc cây ghép bắt đầu ra rễ, chúng sẽ ngay lập tức thiết lập liên minh cộng sinh, tạo ra một cây giống có sức đề kháng vượt trội trước khi đưa ra ngoài môi trường vườn.
- Khi Trồng Mới: Rắc chế phẩm AMF vào trực tiếp dưới đáy hố trồng, để hệ rễ tiếp xúc với bào tử.
- Vườn Sầu Riêng Trưởng Thành: Ở những vườn phục hồi sau khi trị bệnh tuyến trùng hay Phytophthora, có thể đào rãnh cạn theo hình chiếu tán lá, bón phân hữu cơ trộn lẫn với nấm AMF. Sự kích thích rễ tơ non mới ra sẽ là môi trường tối ưu cho AMF phát triển trở lại.
6. Kết Luận: Lời Giải Cho Tương Lai Canh Tác Sầu Riêng Năng Suất Cao Và Xanh
Mối quan hệ cộng sinh giữa nấm rễ nội sinh AMF và cây sầu riêng là một minh chứng hoàn hảo về trí tuệ của tạo hóa trong việc xây dựng các hệ sinh thái bền vững. Không thể có một cây sầu riêng hoàn toàn khỏe mạnh, kháng chịu bệnh tật xuất sắc, chịu hạn giỏi và cho chất lượng trái thượng hạng nếu thiếu đi đối tác nấm rễ nằm ẩn sâu dưới lòng đất. Canh tác sầu riêng bền vững không chỉ là việc hiểu biết về phân bón hóa học và thuốc bảo vệ thực vật, mà sâu sắc hơn, là nghệ thuật quản lý và khai thác trí thông minh của hệ vi sinh vật đất. Đầu tư vào sức khỏe của Mycorrhizae chính là chìa khóa vàng để đảm bảo sự thịnh vượng lâu dài cho ngành sản xuất sầu riêng.